Toehold-Mediated Strand Displacement를 활용한 핵산 바이오센서 원리
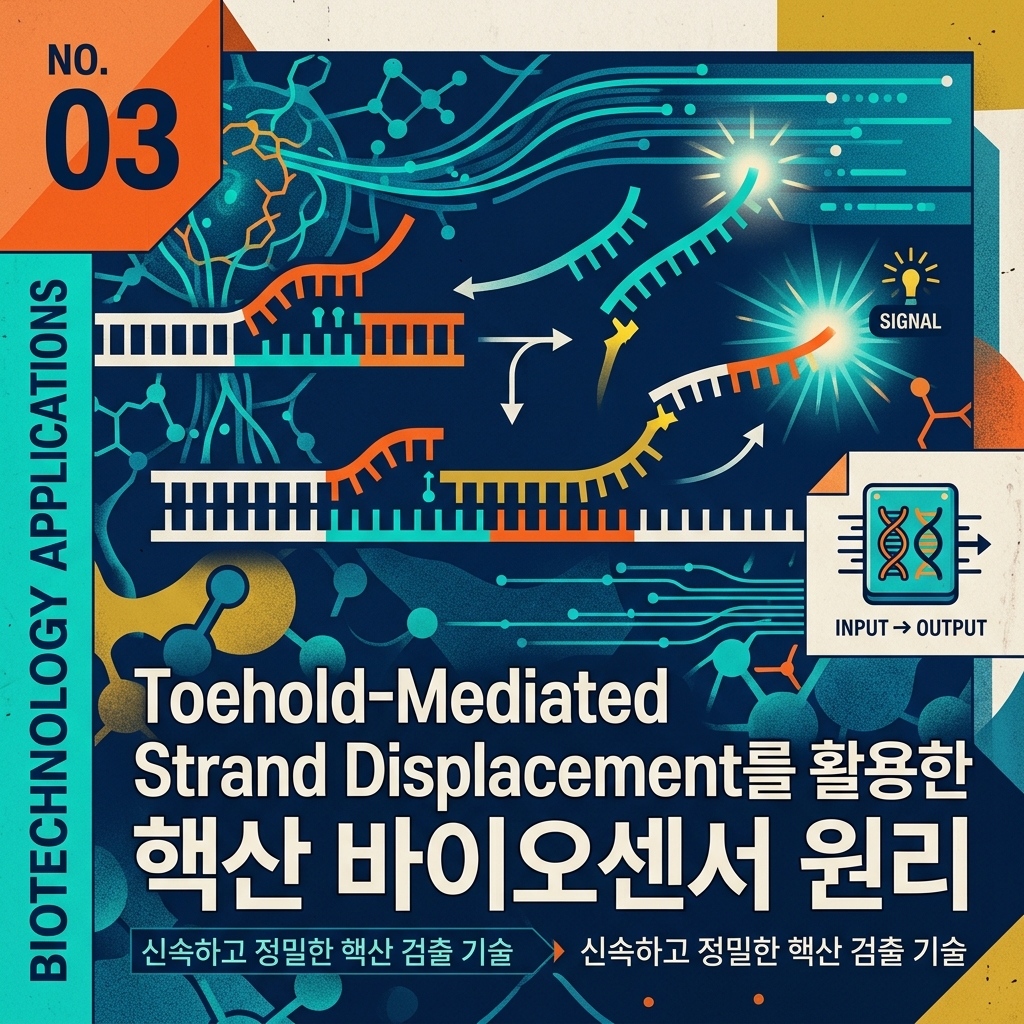
DNA는 상보적인 염기서열을 이용해 결합할 뿐 아니라 이미 형성된 이중가닥의 한 strand를 다른 strand로 교체할 수도 있습니다. Toehold-Mediated Strand Displacement는 이러한 특성을 이용해 표적 핵산의 인식을 구조 변화와 신호 발생으로 연결하는 기술입니다.
결합된 DNA Strand를 다른 Strand로 바꾸는 방법
두 개의 상보적인 DNA strand가 결합하면 double-stranded DNA가 만들어집니다.
이미 안정적인 duplex가 형성되어 있다면 새로운 DNA strand가 접근하더라도 기존 strand를 쉽게 밀어내기는 어렵습니다.
하지만 duplex 한쪽에 결합하지 않은 짧은 single-stranded sequence를 남겨두면 상황이 달라집니다.
이 노출된 영역을 toehold라고 합니다.
새로운 DNA가 toehold와 상보적인 sequence를 가지고 있다면 먼저 이곳에 결합할 수 있습니다.
이 작은 결합이 시작점이 되어 기존 duplex의 base pair가 순차적으로 교체됩니다.
최종적으로 새로운 strand가 기존 strand를 밀어내고 더 안정적인 duplex를 형성할 수 있습니다.
이 반응이 Toehold-Mediated Strand Displacement(TMSD)입니다.
기본 구조에는 세 종류의 Strand가 있다
가장 단순한 TMSD system은 세 종류의 strand로 설명할 수 있습니다.
먼저 두 strand가 결합해 있는 duplex가 필요합니다.
편의상 긴 strand를 Substrate Strand, 여기에 결합한 짧은 strand를 Incumbent Strand라고 하겠습니다.
Substrate strand의 일부는 incumbent와 결합하지 않고 single-stranded 상태로 남겨둡니다.
이 부분이 toehold입니다.
그리고 외부에서 세 번째 strand인 Invader Strand가 들어옵니다.
Invader는 toehold뿐 아니라 incumbent가 차지하고 있는 영역과도 상보적인 sequence를 가집니다.
전체 구조는 다음처럼 생각할 수 있습니다.
Substrate + Incumbent → 초기 Duplex
여기에
Invader → Toehold Recognition
이 일어나면서 strand exchange가 시작됩니다.
첫 단계는 Toehold Recognition이다
Invader가 아무 위치에서나 duplex를 공격하는 것은 아닙니다.
먼저 노출된 toehold에 결합합니다.
Toehold는 strand displacement가 시작될 수 있는 일종의 molecular docking site입니다.
Invader가 toehold에 결합하면 substrate 가까이에 안정적으로 머무를 수 있게 됩니다.
이 상태에서 invader와 incumbent는 인접한 sequence를 두고 경쟁할 수 있습니다.
따라서 toehold는 단순히 target을 인식하는 영역이 아니라 strand displacement의 반응속도를 조절하는 핵심 요소입니다.
Branch Migration이 Strand를 교체한다
Invader가 toehold에 결합한 다음에는 branch migration이 진행될 수 있습니다.
Invader의 nucleotide가 substrate와 새로운 base pair를 만들면 기존 incumbent의 base pair 하나가 풀릴 수 있습니다.
다음 위치에서도 같은 변화가 반복됩니다.
즉,
기존 Base Pair 해체
와
새로운 Base Pair 형성
이 연속적으로 진행됩니다.
이 과정이 duplex를 따라 이동하면서 invader가 차지하는 영역은 점점 길어지고 incumbent가 결합한 영역은 줄어듭니다.
마지막 base pair까지 교체되면 incumbent strand가 완전히 떨어져 나갑니다.
최종적으로
Substrate-Invader Duplex + Free Incumbent
가 만들어집니다.
DNA를 자르지 않고도 Strand를 교체한다
TMSD의 특징은 일반적인 nuclease cleavage와 다릅니다.
Restriction enzyme이나 CRISPR nuclease를 이용하면 phosphodiester backbone을 절단해 nucleic acid 구조를 변화시킬 수 있습니다.
TMSD에서는 DNA backbone을 절단할 필요가 없습니다.
또한 polymerase가 새로운 DNA를 합성하지도 않습니다.
기존에 존재하는 oligonucleotide 사이의 hybridization 관계만 바뀝니다.
따라서
Hybridization
→ Branch Migration
→ Strand Exchange
라는 물리화학적인 과정만으로 molecular reaction을 구성할 수 있습니다.
Target DNA를 Invader로 사용할 수 있다
이러한 반응을 biosensor에 적용하려면 검출하려는 target을 invader strand로 이용할 수 있습니다.
먼저 reporter가 포함된 DNA duplex를 준비합니다.
Target이 없다면 reporter는 기존 strand와 결합한 상태를 유지합니다.
Target DNA가 들어오면 노출된 toehold에 결합합니다.
이후 branch migration을 통해 기존 strand를 밀어냅니다.
방출되는 strand에 fluorophore나 다른 signal component를 연결하면 target recognition을 measurable signal로 변환할 수 있습니다.
즉,
Target Recognition
→ Strand Displacement
→ Reporter Release
→ Signal Generation
이라는 biosensor를 만들 수 있습니다.
Fluorophore와 Quencher를 이용하면 어떻게 될까?
한 가지 예로 fluorophore와 quencher를 이용한 구조를 생각할 수 있습니다.
초기 상태에서는 두 물질이 가까이 위치하도록 DNA duplex를 설계합니다.
이 상태에서는 fluorescence가 억제됩니다.
Target strand가 toehold에 결합하면 strand displacement가 시작됩니다.
Reporter strand가 duplex에서 방출되거나 구조가 변하면서 fluorophore와 quencher 사이의 거리가 증가합니다.
그 결과 fluorescence가 증가합니다.
따라서 육안으로는 확인할 수 없는 nucleotide 수준의 strand exchange를 optical signal로 변환할 수 있습니다.
중요한 것은 TMSD 자체가 fluorescence를 발생시키는 것이 아니라 TMSD로 발생한 구조 변화를 reporter system이 신호로 읽는다는 점입니다.
Toehold가 없으면 반응은 크게 달라진다
Invader가 incumbent와 완전히 동일한 영역에 상보적이라고 해도 접근할 single-stranded toehold가 없다면 strand displacement는 훨씬 느려질 수 있습니다.
이미 형성된 duplex의 내부 base pair를 외부 strand가 직접 침투해 교체하는 것은 kinetic barrier가 크기 때문입니다.
Toehold를 노출하면 invader가 먼저 안정적인 결합을 만들 수 있습니다.
이 결합으로 invader의 effective local concentration이 높아지고 branch migration을 시작할 기회가 증가합니다.
따라서 TMSD에서 toehold는 선택적인 장식이 아니라 reaction kinetics를 결정하는 핵심적인 설계 요소입니다.
Toehold 길이는 반응속도를 조절할 수 있다
TMSD의 흥미로운 특징은 toehold sequence와 길이를 변경해 reaction kinetics를 조절할 수 있다는 점입니다.
매우 짧은 toehold에서는 invader가 결합하더라도 쉽게 다시 떨어질 수 있습니다.
따라서 productive strand displacement로 이어질 확률이 낮아질 수 있습니다.
Toehold가 충분한 길이를 가지면 invader의 초기 결합이 안정해지고 strand displacement rate가 증가할 수 있습니다.
다만 일정 범위 이상에서는 toehold를 계속 길게 만드는 것이 반응속도를 동일한 비율로 증가시키지는 않습니다.
따라서 실제 DNA circuit에서는 원하는 kinetics에 맞춰 toehold의 길이와 sequence를 설계합니다.
Sequence 하나로 반응속도를 프로그램할 수 있다
일반적인 chemical reaction에서는 온도나 catalyst concentration을 변경해 반응속도를 조절할 수 있습니다.
TMSD에서는 DNA sequence 자체도 reaction rate를 조절하는 설계 변수가 됩니다.
Toehold의 길이뿐 아니라 GC composition, secondary structure와 주변 domain이 반응에 영향을 줄 수 있습니다.
따라서 서로 다른 toehold를 가진 DNA gate를 설계하면 빠르게 반응하는 circuit과 상대적으로 천천히 반응하는 circuit을 만들 수 있습니다.
이러한 특성 때문에 TMSD는 단순한 nucleic acid sensor뿐 아니라 DNA computing과 molecular logic circuit에서도 중요한 반응 메커니즘으로 사용됩니다.
Single Nucleotide 차이를 구별하는 데도 이용할 수 있다
Target sequence에 하나의 mismatch가 존재하면 strand displacement kinetics가 달라질 수 있습니다.
특히 mismatch가 toehold나 branch migration의 중요한 위치에 있으면 invader가 substrate를 충분히 안정적으로 차지하지 못할 수 있습니다.
Perfect-match target에서는 strand displacement가 빠르게 진행되는 반면 mismatch target에서는 반응이 느려지거나 최종 product formation이 감소하도록 설계할 수 있습니다.
이를 이용하면 single nucleotide variation을 구별하는 biosensor를 구성할 가능성이 있습니다.
그러나 mismatch 하나가 존재한다는 이유만으로 항상 높은 specificity가 확보되는 것은 아닙니다.
Mismatch 위치와 종류, toehold 길이, reaction temperature 및 sequence composition에 따라 discrimination 정도가 달라집니다.
Toehold Exchange를 이용해 선택성을 높일 수도 있다
단순한 TMSD에서는 invader가 substrate와 결합하고 incumbent가 방출되면서 더 많은 base pair가 형성될 수 있습니다.
따라서 reaction이 thermodynamically 유리하게 진행될 수 있습니다.
하지만 single nucleotide discrimination을 강화하려는 경우 toehold exchange와 같은 설계 전략을 사용할 수 있습니다.
이 구조에서는 invader가 input toehold를 통해 결합하지만 reaction이 진행된 뒤 다른 toehold 영역이 방출될 수 있습니다.
결과적으로 reactant와 product 사이의 전체적인 base-pair 수 차이를 줄여 reaction의 energetic bias를 조절할 수 있습니다.
그러면 perfect match와 mismatch에서 발생하는 작은 free-energy difference가 상대적으로 중요해질 수 있습니다.
이는 TMSD에서 단순히 결합 여부뿐 아니라 반응의 thermodynamic landscape 자체를 설계할 수 있음을 보여줍니다.
Target을 한 번만 사용하는 Sensor의 한계
가장 단순한 TMSD biosensor에서는 target 하나가 reporter complex 하나를 변환합니다.
즉,
Target 1개
→ Reporter 1개 방출
과 같은 stoichiometric reaction이 될 수 있습니다.
이 경우 target concentration이 매우 낮으면 발생하는 signal 역시 제한적입니다.
따라서 TMSD를 극미량 핵산 검출에 활용하려면 target recycling 또는 다른 amplification circuit과 연결할 수 있습니다.
CHA와 HCR 같은 기술에서 TMSD가 핵심적인 reaction mechanism으로 사용되는 이유도 여기에 있습니다.
CHA의 내부 반응도 TMSD로 설명할 수 있다
앞서 살펴본 Catalytic Hairpin Assembly에서는 target이 H1의 toehold에 결합해 hairpin을 엽니다.
그 다음 H1이 H2를 열고 target이 다시 방출됩니다.
이 각각의 구조 변화에는 toehold-mediated strand displacement가 관여할 수 있습니다.
즉, CHA는 TMSD와 완전히 별개의 물리적 현상을 이용하는 것이 아닙니다.
TMSD를 여러 단계로 연결해 target recycling이 가능한 reaction circuit을 만든 것으로 이해할 수 있습니다.
따라서
TMSD = 기본적인 Strand Exchange Mechanism
CHA = TMSD를 이용한 Catalytic Amplification Circuit
으로 구분할 수 있습니다.
HCR에서도 같은 원리가 사용된다
Hybridization Chain Reaction 역시 비슷합니다.
Initiator가 H1의 toehold에 결합하고 strand displacement를 통해 hairpin을 엽니다.
열린 H1은 H2의 toehold를 인식하고 다시 H2를 엽니다.
이 과정이 반복되면서 긴 HCR polymer가 만들어집니다.
따라서 CHA와 HCR을 이해하기 전에 TMSD를 이해하면 두 기술의 분자 수준 반응을 보다 명확하게 설명할 수 있습니다.
차이는 TMSD 자체가 아니라 strand displacement event를 어떤 network architecture로 연결했는지에 있습니다.
Molecular Logic Gate를 만들 수도 있다
TMSD는 여러 input이 존재할 때만 특정 output이 나오도록 설계할 수도 있습니다.
예를 들어 target A가 먼저 strand 하나를 방출하고, 이 strand가 다른 DNA gate에 작용해야 target B를 인식할 수 있도록 만들 수 있습니다.
그러면 두 조건이 모두 충족되어야 최종 reporter가 활성화되는 AND logic과 유사한 molecular circuit을 구성할 수 있습니다.
반대로 여러 target 중 하나만 존재해도 동일한 output strand가 방출되도록 설계하면 OR logic과 같은 구조를 만들 수 있습니다.
이러한 DNA logic circuit에서는 전자회로의 전압 대신 nucleic acid sequence가 input과 output 역할을 합니다.
분자진단에서는 이러한 개념을 이용해 하나의 biomarker가 아니라 여러 biomarker의 조합을 인식하는 연구로 확장할 수 있습니다.
Output Strand를 다음 반응의 Input으로 사용할 수 있다
TMSD가 molecular circuit에 적합한 또 하나의 이유는 한 reaction에서 방출된 strand를 다음 reaction의 input으로 사용할 수 있기 때문입니다.
첫 번째 DNA gate에서
Input A → Output B
가 만들어졌다면 Output B가 두 번째 gate의 toehold를 인식하도록 설계할 수 있습니다.
그러면
Input A
→ Gate 1
→ Output B
→ Gate 2
→ Output C
처럼 여러 단계의 molecular information processing이 가능합니다.
이러한 cascade 구조는 target recognition과 signal generation 사이에 여러 논리 단계를 삽입할 수 있게 합니다.
Leak Reaction은 TMSD에서도 중요한 문제다
설계상 target이 존재해야만 strand displacement가 일어나더라도 실제 reaction에서는 background가 발생할 수 있습니다.
DNA duplex의 말단에서 일시적인 base-pair opening이 발생하거나 예상하지 못한 secondary structure와 interaction이 만들어질 수 있기 때문입니다.
Target 없이 output strand가 조금씩 방출되면 이를 leak reaction으로 볼 수 있습니다.
특히 여러 TMSD gate를 cascade로 연결하면 작은 leak가 다음 gate를 활성화해 최종 background를 크게 만들 수 있습니다.
따라서 복잡한 DNA circuit에서는 target-dependent reaction rate뿐 아니라 leak suppression이 매우 중요합니다.
Secondary Structure도 고려해야 한다
설계한 target sequence가 항상 자유로운 single strand로 존재하는 것은 아닙니다.
Target 자체가 hairpin이나 다른 secondary structure를 형성하면 toehold와 상보적인 영역이 내부에 가려질 수 있습니다.
그러면 sequence상으로는 완전히 상보적인 target이라도 실제 reaction rate가 낮아질 수 있습니다.
RNA target에서는 이러한 문제가 더욱 중요할 수 있습니다.
RNA는 다양한 intramolecular secondary structure를 형성할 수 있기 때문입니다.
따라서 실제 biosensor에서는 단순한 sequence complementarity뿐 아니라 target accessibility도 고려해야 합니다.
생체시료에서는 더 많은 변수가 존재한다
정제된 synthetic oligonucleotide를 이용한 buffer 환경에서는 TMSD reaction을 비교적 정밀하게 제어할 수 있습니다.
하지만 serum, plasma, cell lysate와 같은 복잡한 biological sample에서는 조건이 달라집니다.
Nuclease가 DNA probe를 분해할 수 있고 다른 biomolecule과 nonspecific interaction이 발생할 수 있습니다.
Sample의 ionic composition 역시 hybridization에 영향을 줄 수 있습니다.
따라서 laboratory proof-of-concept에서 높은 signal-to-background ratio가 나타났다고 해서 실제 임상 시료에서도 동일한 성능을 보장하는 것은 아닙니다.
TMSD 기반 Biosensor의 기본 구조
가장 단순한 검출 system을 단계별로 정리하면 다음과 같습니다.
Target이 없는 경우
Substrate-Incumbent Duplex
→ Toehold만 노출
→ Strand Exchange 없음
→ Reporter 유지
→ Low Signal
Target이 존재하는 경우
Target Invader
→ Toehold Binding
→ Branch Migration
→ Incumbent Strand Displacement
→ Reporter Structure 변화
→ Signal 증가
Amplification circuit을 연결하면 여기에서 방출된 strand가 다시 다른 DNA gate를 활성화할 수 있습니다.
TMSD의 핵심은 DNA를 정보처리 소재로 사용하는 것이다
TMSD에서 DNA는 단순히 검출해야 하는 genetic material만을 의미하지 않습니다.
Probe와 gate를 구성하는 DNA 자체가 molecular machine의 부품처럼 작동합니다.
어떤 sequence가 먼저 결합할지, 어떤 strand가 방출될지, 방출된 strand가 다음에 어떤 gate를 활성화할지를 미리 설계할 수 있습니다.
따라서 DNA sequence에는 염기정보뿐 아니라 reaction pathway에 대한 정보도 포함시킬 수 있습니다.
이러한 특징 때문에 TMSD는 DNA nanotechnology, molecular computing, biosensor 분야를 연결하는 기본적인 기술로 활용되고 있습니다.
마치며
Toehold-Mediated Strand Displacement는 노출된 single-stranded toehold를 시작점으로 기존 DNA duplex의 strand를 새로운 strand로 교체하는 반응입니다.
Invader strand가 먼저 toehold에 결합하면 branch migration이 진행되고 기존 incumbent strand가 순차적으로 밀려납니다.
전체 반응은
Toehold Recognition
→ Invader Binding
→ Branch Migration
→ Incumbent Displacement
→ Output Release
로 정리할 수 있습니다.
이 과정에는 반드시 polymerase나 nuclease가 필요한 것이 아니며 DNA의 sequence-specific hybridization과 thermodynamic difference를 이용해 반응을 진행할 수 있습니다.
특히 중요한 점은 TMSD가 하나의 검출법에만 사용되는 기술이 아니라는 것입니다.
CHA에서는 target recycling을 만드는 기본 반응으로, HCR에서는 연속적인 hairpin opening을 만드는 반응으로 활용할 수 있습니다. 여러 DNA gate를 연결하면 molecular logic circuit이나 cascade signal amplification도 설계할 수 있습니다.
결국 TMSD의 핵심은 표적 핵산의 존재를 단순한 결합으로 끝내지 않고, 하나의 strand가 다른 strand를 밀어내는 구조적 변환을 통해 다음 분자 반응으로 전달한다는 것입니다.
이러한 특성 덕분에 TMSD는 핵산 인식, signal switching, molecular computation을 연결할 수 있는 DNA 기반 biosensor의 중요한 설계 원리로 활용되고 있습니다.
※ 본 글은 Toehold-Mediated Strand Displacement와 핵산 바이오센서의 작동 원리를 설명하기 위한 교육 목적의 콘텐츠이며 특정 질환에 대한 임상 진단 성능을 의미하지 않습니다.


댓글 0
첫 댓글을 남겨보세요.