Aptamer 기반 분자진단과 SELEX를 이용한 표적 인식 원리
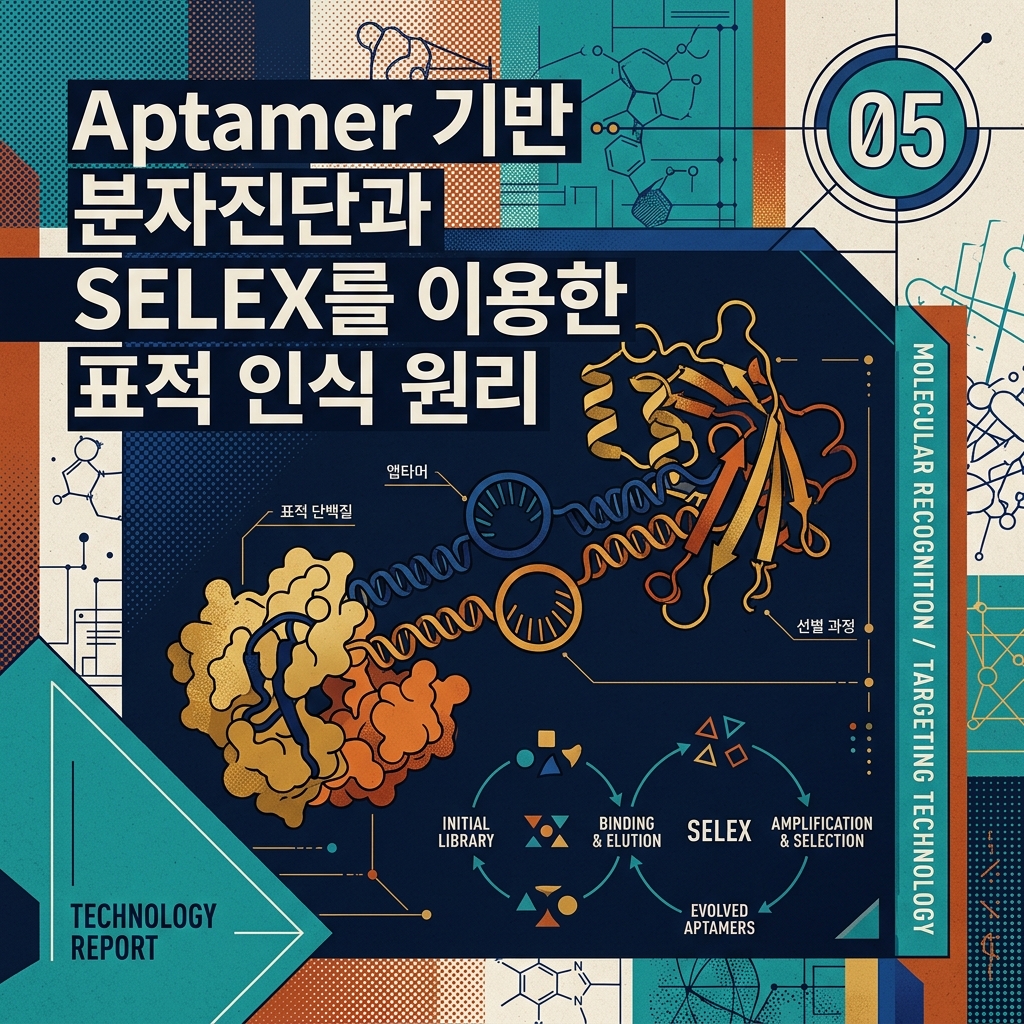
Aptamer는 특정 표적과 결합하도록 선별된 짧은 DNA 또는 RNA 분자입니다. 염기서열이 만드는 3차원 구조로 단백질·소분자 등을 인식하며, 결합에 따른 구조 변화를 형광·전기화학·핵산 증폭 신호로 바꿔 바이오센서에 활용할 수 있습니다.
DNA와 RNA가 단백질을 인식할 수 있을까?
DNA는 유전정보를 저장하고 RNA는 유전정보 전달과 조절에 관여하는 molecule로 익숙합니다.
하지만 nucleic acid의 역할이 여기에만 한정되는 것은 아닙니다.
특정 sequence를 가진 single-stranded DNA(ssDNA)나 RNA는 intramolecular base pairing과 stacking interaction 등을 통해 고유한 three-dimensional structure를 형성할 수 있습니다.
Stem,
Loop,
Bulge,
Hairpin,
Pseudoknot,
G-quadruplex
같은 구조가 만들어질 수 있습니다.
이 구조의 chemical surface가 특정 target molecule과 선택적으로 상호작용하도록 선별된 nucleic acid를 aptamer라고 합니다.
Aptamer는 단순한 Complementary Probe가 아니다
일반적인 DNA probe는 상보적인 nucleic acid sequence를 hybridization으로 인식합니다.
예를 들어
5′-AGCT-3′
라는 sequence가 있다면 이에 상보적인 sequence와 Watson-Crick base pairing을 형성합니다.
Aptamer는 다른 방식으로 target을 인식할 수 있습니다.
표적이 반드시 complementary DNA나 RNA일 필요가 없습니다.
Protein,
Peptide,
Small molecule,
Ion,
Cell surface target
등 다양한 물질을 대상으로 aptamer가 연구됩니다.
즉, aptamer의 핵심은 sequence complementarity보다 sequence가 만들어내는 molecular structure와 target 사이의 interaction입니다.
Aptamer는 어떻게 Target에 결합할까?
Aptamer와 target 사이에는 여러 non-covalent interaction이 관여할 수 있습니다.
대표적으로
Hydrogen Bonding
Electrostatic Interaction
π-π Stacking
van der Waals Interaction
Hydrophobic Interaction
등을 생각할 수 있습니다.
어떤 interaction이 중요한지는 aptamer sequence와 target structure에 따라 달라집니다.
따라서 aptamer-target binding을 단순히 DNA 염기와 protein 사이의 하나의 결합으로 설명하기는 어렵습니다.
여러 weak interaction이 특정 3D geometry에서 함께 작용해 molecular recognition을 형성할 수 있습니다.
항체와 비슷하지만 항체는 아니다
Aptamer는 특정 target을 선택적으로 인식할 수 있다는 점에서 흔히 antibody와 비교됩니다.
하지만 molecular structure는 완전히 다릅니다.
Antibody는 protein입니다.
Aptamer는 nucleic acid입니다.
따라서 생산 방식도 다릅니다.
Antibody는 biological expression과 purification 과정이 필요할 수 있지만 DNA aptamer는 sequence가 결정되면 chemical oligonucleotide synthesis로 생산할 수 있습니다.
RNA aptamer 역시 transcription 또는 chemical synthesis 등을 이용할 수 있습니다.
이 때문에 batch-to-batch molecular composition을 제어하기 쉽다는 장점이 있을 수 있습니다.
그러나 aptamer가 모든 target에서 antibody보다 우수하다는 의미는 아닙니다.
Aptamer는 처음부터 어떻게 만들어질까?
원하는 target과 결합하는 DNA sequence를 처음부터 사람이 정확히 예측하기는 어렵습니다.
가능한 sequence 조합이 너무 많기 때문입니다.
따라서 매우 많은 random nucleic acid sequence에서 target과 잘 결합하는 sequence를 반복적으로 골라냅니다.
대표적인 방법이 SELEX입니다.
SELEX는
Systematic Evolution of Ligands by EXponential Enrichment
의 약자입니다.
쉽게 말하면 거대한 nucleic acid library에서 원하는 molecular binding property를 가진 sequence를 반복 선택하고 증폭하는 과정입니다.
SELEX는 얼마나 많은 Sequence에서 시작할까?
SELEX에서는 중앙에 random sequence region을 가진 oligonucleotide library를 사용할 수 있습니다.
이론적으로 random region의 길이가 증가하면 가능한 sequence diversity는 매우 빠르게 증가합니다.
예를 들어 nucleotide 종류가 네 가지이므로 길이가 n인 완전한 sequence space는 4ⁿ개의 조합을 가질 수 있습니다.
실험에서는 이 모든 조합을 물리적으로 포함할 수 없기 때문에 매우 큰 random library의 일부를 사용합니다.
각 sequence 양쪽에는 PCR primer가 결합할 수 있는 fixed region을 배치할 수 있습니다.
개념적으로
Fixed Primer Region – Random Region – Fixed Primer Region
구조를 가집니다.
Random region에서 target-binding sequence를 찾습니다.
첫 번째 단계는 Incubation이다
Random oligonucleotide library를 target molecule과 함께 반응시킵니다.
Library 안에는 target과 거의 결합하지 않는 sequence가 많습니다.
일부 sequence는 약하게 결합할 수 있습니다.
아주 적은 sequence는 상대적으로 높은 affinity를 가질 수 있습니다.
따라서 첫 round에서는
Random Library
→ Target Incubation
→ Target-Bound Sequence + Unbound Sequence
가 만들어집니다.
이제 target에 결합한 sequence를 분리해야 합니다.
Partitioning이 SELEX의 핵심인 이유
Target에 잘 결합하는 aptamer를 얻으려면 bound sequence와 unbound sequence를 정확하게 나눠야 합니다.
이 과정을 partitioning이라고 합니다.
Target을 bead에 고정했다면 target-bound oligonucleotide는 bead와 함께 남기고 결합하지 않은 sequence를 washing으로 제거할 수 있습니다.
Filter,
Affinity column,
Magnetic bead,
Capillary electrophoresis
등 다양한 separation strategy가 사용될 수 있습니다.
Partition efficiency가 낮으면 target에 결합하지 않은 sequence까지 다음 round에 살아남을 수 있습니다.
따라서 SELEX의 성능은 PCR만큼이나 selection과 partitioning에 크게 좌우됩니다.
살아남은 Sequence는 왜 증폭할까?
한 번의 selection에서 얻은 target-binding sequence의 양은 매우 적습니다.
다음 selection round를 수행하려면 이 sequence population을 다시 늘려야 합니다.
DNA SELEX에서는 PCR을 사용할 수 있습니다.
Target에 결합한 DNA를 회수한 뒤 PCR로 증폭합니다.
그 다음 다시 single-stranded DNA 형태를 준비해 다음 round에 투입할 수 있습니다.
즉,
Binding
→ Partition
→ Recovery
→ Amplification
→ 다음 Selection Round
가 반복됩니다.
SELEX의 ‘Evolution’은 무슨 의미일까?
SELEX라는 이름에는 evolution이 들어갑니다.
생물 개체가 진화한다는 의미와 완전히 같은 것은 아니지만 selection pressure에 의해 특정 sequence population이 점차 enrichment된다는 점에서 evolutionary selection과 유사한 개념을 사용합니다.
처음 library에는 수많은 sequence가 섞여 있습니다.
Target과 결합하지 않는 sequence는 제거됩니다.
결합하는 sequence는 살아남아 증폭됩니다.
이 과정을 반복하면 library composition이 달라집니다.
초기에는 매우 희귀했던 high-affinity sequence가 전체 population에서 차지하는 비율이 증가할 수 있습니다.
Selection Round를 많이 하면 항상 좋은가?
반드시 그렇지는 않습니다.
Round를 반복하면 target-binding sequence가 enrichment될 수 있습니다.
하지만 너무 많은 round를 수행하면 다른 문제가 발생할 수 있습니다.
PCR에서 잘 증폭되는 sequence가 binding affinity와 관계없이 선택될 수 있습니다.
특정 sequence family가 지나치게 우세해져 diversity가 감소할 수도 있습니다.
Selection condition에 적응한 sequence가 실제 biological sample에서는 좋은 성능을 보이지 않을 수도 있습니다.
따라서 SELEX는 단순히 round 수를 최대화하는 기술이 아닙니다.
Counter-Selection은 왜 필요할까?
Target에 잘 결합하는 것만으로는 좋은 aptamer라고 할 수 없습니다.
구조가 비슷한 다른 molecule에도 강하게 결합한다면 diagnostic specificity가 낮아질 수 있습니다.
이를 줄이기 위해 counter-selection 또는 negative selection을 사용할 수 있습니다.
예를 들어 Target A에 결합하는 aptamer를 찾고 있는데 구조가 비슷한 Protein B와는 결합하지 않아야 한다고 가정할 수 있습니다.
Library를 Protein B에 먼저 노출합니다.
Protein B에 결합한 sequence는 제거합니다.
남은 sequence를 Target A selection에 사용합니다.
이를 통해
Target에는 결합하지만 유사한 Non-Target에는 덜 결합하는 sequence
를 enrichment할 수 있습니다.
Affinity와 Specificity는 같은 의미가 아니다
두 개념을 구분해야 합니다.
Affinity는 aptamer가 특정 target과 얼마나 강하게 결합하는지를 나타냅니다.
Specificity는 다른 molecule과 비교했을 때 target을 얼마나 선택적으로 인식하는지를 의미합니다.
Target A에 매우 강하게 결합하는 aptamer가 Protein B에도 비슷하게 강하게 결합한다면 affinity는 높지만 specificity는 부족할 수 있습니다.
따라서 diagnostic aptamer를 평가할 때는 target에 대한 binding strength만 확인해서는 안 됩니다.
Dissociation Constant, Kd는 무엇일까?
Aptamer 논문에서 자주 등장하는 값이 **dissociation constant(Kd)**입니다.
단순한 1:1 binding model을 가정하면 Kd는 aptamer-target interaction의 equilibrium affinity를 표현하는 데 사용할 수 있습니다.
일반적으로 Kd가 작을수록 높은 affinity를 의미합니다.
하지만 서로 다른 논문의 Kd 숫자만 직접 비교하는 것은 주의해야 합니다.
Measurement method,
Buffer composition,
Temperature,
Ion concentration,
Target immobilization,
Binding model
등에 따라 측정값이 달라질 수 있습니다.
따라서 Kd는 experimental condition과 함께 해석해야 합니다.
Aptamer의 구조는 고정되어 있을까?
Single-stranded nucleic acid는 주변 환경에 따라 folding state가 달라질 수 있습니다.
Temperature와 ionic strength가 변하면 secondary structure가 달라질 수 있습니다.
특히 Mg²⁺ 같은 divalent ion은 일부 aptamer folding과 target binding에 중요한 영향을 줄 수 있습니다.
SELEX 과정에서는 잘 결합했던 aptamer가 실제 serum이나 intracellular environment에서는 다른 structure를 형성할 수도 있습니다.
따라서 selection buffer와 실제 diagnostic sample 사이의 차이가 중요합니다.
Target이 결합하면 Aptamer 구조가 바뀔 수 있다
일부 aptamer는 target과 결합하면서 conformation이 변화합니다.
이를 structure-switching aptamer로 sensor에 활용할 수 있습니다.
Target이 없을 때는 한 구조를 유지합니다.
Target이 결합하면 더 안정적인 target-bound structure로 전환됩니다.
이 structural change를
Fluorescence,
Electrochemical signal,
FRET,
DNA strand displacement
등으로 변환할 수 있습니다.
즉, aptamer는 recognition element이면서 동시에 molecular switch가 될 수 있습니다.
Fluorescence Aptasensor는 어떻게 만들까?
Aptamer 양쪽 또는 특정 위치에 fluorophore와 quencher를 배치할 수 있습니다.
Target이 없을 때 두 molecule이 가까워 fluorescence가 억제되도록 설계할 수 있습니다.
Target binding으로 aptamer structure가 변하면서 fluorophore와 quencher 사이의 거리가 증가하면 fluorescence가 회복될 수 있습니다.
반대로 target binding으로 두 reporter가 가까워져 signal이 감소하도록 설계할 수도 있습니다.
따라서
Target Binding
→ Aptamer Conformational Change
→ Reporter Distance Change
→ Fluorescence Change
로 molecular recognition을 optical signal로 바꿀 수 있습니다.
Molecular Beacon과 무엇이 다를까?
Molecular beacon도 stem-loop 구조를 가지고 target binding에 따라 fluorescence가 변합니다.
하지만 기본적인 recognition principle이 다릅니다.
Molecular beacon은 일반적으로 complementary nucleic acid target과 Watson-Crick hybridization을 형성합니다.
Aptamer는 3D folding structure를 이용해 protein이나 small molecule 같은 non-nucleic-acid target도 인식할 수 있습니다.
따라서 구조 변화라는 점은 비슷할 수 있지만 target recognition chemistry는 다릅니다.
Electrochemical Aptasensor는 어떻게 작동할까?
Aptamer를 gold electrode에 고정할 수 있습니다.
Aptamer에 methylene blue(MB)와 같은 redox reporter를 연결하는 방식이 사용될 수 있습니다.
Target이 없을 때 reporter와 electrode 사이의 거리가 특정 상태를 유지합니다.
Target binding으로 aptamer structure가 바뀌면 reporter가 electrode에 가까워지거나 멀어질 수 있습니다.
Electron-transfer efficiency가 변하면서 electrochemical current가 달라집니다.
즉,
Molecular Binding
→ Nanoscale Distance Change
→ Electron Transfer Change
→ Electrical Signal
로 target을 검출할 수 있습니다.
Gold Electrode에 DNA를 어떻게 고정할까?
Thiol-modified DNA는 gold surface에 고정하는 데 널리 사용됩니다.
따라서 DNA aptamer의 한쪽 끝에 thiol group을 도입할 수 있습니다.
이를 gold electrode에 immobilization하면 sensor surface에 aptamer layer를 만들 수 있습니다.
하지만 aptamer를 많이 고정한다고 항상 sensitivity가 증가하는 것은 아닙니다.
Surface density가 너무 높으면 neighboring aptamer 사이의 steric hindrance가 증가할 수 있습니다.
Target이 binding pocket에 접근하기 어려워질 수도 있습니다.
따라서 적절한 probe spacing이 필요합니다.
Aptamer와 TMSD를 연결할 수도 있다
Target binding으로 aptamer에 결합되어 있던 complementary strand가 방출되도록 설계할 수 있습니다.
방출된 DNA strand를 downstream TMSD circuit의 input으로 사용할 수 있습니다.
예를 들어
Protein Target
→ Aptamer Binding
→ DNA Trigger Release
→ Toehold-Mediated Strand Displacement
→ Signal Generation
구조를 만들 수 있습니다.
이 방식의 중요한 점은 protein information이 DNA trigger로 변환된다는 것입니다.
따라서 protein target을 CHA나 HCR 같은 nucleic acid circuit에 연결할 수 있습니다.
Aptamer와 CHA를 결합하면
Target-dependent aptamer structural change를 이용해 CHA initiator를 방출할 수 있습니다.
Initiator가 H1을 열고 H1이 H2를 열면서 target-independent downstream assembly가 반복됩니다.
이 경우 역할은
Aptamer → Target Recognition
Released DNA → Molecular Trigger
CHA → Signal Amplification
으로 구분됩니다.
Aptamer 자체가 CHA amplification을 수행하는 것은 아닙니다.
HCR과도 연결할 수 있다
Target이 aptamer에 결합하면서 HCR initiator sequence가 노출되도록 설계할 수 있습니다.
Initiator가 H1과 H2 hairpin을 연속적으로 열면 긴 nicked double-stranded DNA assembly가 형성됩니다.
여기에 fluorescent reporter를 결합하면 signal을 증폭할 수 있습니다.
따라서 aptamer는 protein이나 small molecule recognition을 nucleic acid amplification circuit으로 전달하는 interface 역할을 할 수 있습니다.
Aptamer와 PCR은 어떻게 연결할까?
Protein은 PCR로 직접 증폭할 수 없습니다.
하지만 target binding이 특정 DNA strand의 release 또는 proximity event를 만들도록 설계하면 해당 DNA를 PCR template로 사용할 수 있습니다.
이러한 접근에서는 aptamer가 target을 인식하고 DNA signal이 protein abundance를 간접적으로 기록합니다.
그 DNA를 PCR이나 dPCR로 측정할 수 있습니다.
PLA와 PEA에서 antibody-DNA conjugate를 사용했던 것과 비슷하게 protein recognition을 amplifiable DNA information으로 변환하는 것입니다.
Aptamer와 Nanoparticle을 결합하는 이유
Gold nanoparticle(AuNP)은 aptamer sensor에서 자주 사용되는 nanomaterial입니다.
DNA를 thiol chemistry로 표면에 고정할 수 있고 plasmonic property도 이용할 수 있기 때문입니다.
Target binding으로 nanoparticle aggregation이 발생하거나 해제되도록 설계하면 optical property가 변할 수 있습니다.
또한 SERS reporter와 결합해 target-dependent hot spot을 만들 수도 있습니다.
하지만 nanoparticle은 target specificity를 제공하지 않습니다.
Sequence specificity 또는 molecular recognition은 aptamer가 담당합니다.
Colorimetric Aptasensor는 어떻게 만들까?
Dispersed gold nanoparticle과 aggregated nanoparticle은 plasmon coupling 때문에 서로 다른 optical property를 나타낼 수 있습니다.
Aptamer-target interaction이 nanoparticle aggregation state를 변화시키도록 만들면 색 변화로 target을 검출하는 assay를 설계할 수 있습니다.
그러나 salt concentration과 nonspecific aggregation이 결과에 큰 영향을 줄 수 있습니다.
따라서 눈으로 색이 달라진다는 단순한 장점만으로 analytical reliability를 판단해서는 안 됩니다.
Aptamer와 SERS를 연결하면
Aptamer를 plasmonic nanoparticle의 recognition element로 사용할 수 있습니다.
Target이 결합하면 두 nanoparticle 사이의 distance가 변하도록 설계할 수 있습니다.
Nanogap이 형성되면서 electromagnetic hot spot이 증가하면 Raman reporter의 SERS signal이 강해질 수 있습니다.
반대로 target binding으로 nanoparticle이 분리되도록 만들면 SERS signal이 감소할 수 있습니다.
즉,
Aptamer Recognition
→ Nanostructure 변화
→ Hot Spot 변화
→ Raman Signal 변화
로 target을 검출할 수 있습니다.
RNA Aptamer는 DNA Aptamer와 무엇이 다를까?
RNA는 2′-OH group을 가지고 있어 DNA와 다른 folding diversity와 chemical property를 가질 수 있습니다.
복잡한 tertiary structure를 형성하는 데 유리한 경우가 있습니다.
하지만 RNA는 RNase에 의해 분해되기 쉽기 때문에 biological sample에서 stability 문제가 클 수 있습니다.
DNA aptamer는 일반적으로 RNA보다 nuclease stability와 취급 측면에서 유리할 수 있습니다.
그러나 어떤 형태가 더 좋은지는 target과 application에 따라 달라집니다.
Modified Nucleotide를 사용할 수도 있다
Natural nucleotide만으로 원하는 affinity나 stability를 얻기 어려울 수 있습니다.
따라서 chemical modification을 가진 nucleotide를 aptamer에 도입할 수 있습니다.
예를 들어 sugar나 base를 변형해 nuclease resistance를 높이거나 새로운 chemical interaction을 제공하는 전략이 연구됩니다.
RNA에서는 2′-fluoro 또는 2′-O-methyl modification 등이 stability 향상에 활용될 수 있습니다.
하지만 modification을 추가하면 aptamer folding과 target affinity도 달라질 수 있습니다.
따라서 modification 전후의 binding property를 다시 검증해야 합니다.
Spiegelmer는 무엇일까?
특수한 aptamer 개념 가운데 Spiegelmer가 있습니다.
Natural nucleic acid는 D-ribose 또는 D-deoxyribose 기반입니다.
Spiegelmer는 반대 chirality를 가진 L-nucleic acid로 구성된 aptamer입니다.
Natural nuclease가 이러한 backbone을 잘 인식하지 못하기 때문에 높은 nuclease resistance를 가질 수 있습니다.
하지만 일반적인 SELEX에서 L-nucleic acid를 그대로 biological target에 selection하는 과정에는 chirality 문제가 존재하므로 mirror-image selection 전략이 사용될 수 있습니다.
이는 aptamer chemistry가 natural DNA·RNA를 넘어 확장될 수 있음을 보여주는 예입니다.
Cell-SELEX는 무엇이 다를까?
Purified protein을 target으로 사용하지 않고 살아 있는 cell 전체를 대상으로 aptamer를 선별할 수도 있습니다.
이를 Cell-SELEX라고 합니다.
Disease cell에 library를 노출해 잘 결합하는 sequence를 선택합니다.
Normal cell 또는 다른 cell에는 counter-selection을 수행할 수 있습니다.
이 방식의 장점은 target protein을 미리 정확하게 알고 있지 않아도 disease-associated cell surface pattern을 인식하는 aptamer를 찾을 가능성이 있다는 점입니다.
하지만 최종 aptamer가 어떤 molecular target에 결합하는지 별도로 규명해야 할 수 있습니다.
Cancer Cell Aptamer는 암을 자동으로 진단할까?
특정 cancer cell line에 잘 결합하는 aptamer가 선별됐다고 해서 실제 환자 암을 바로 진단할 수 있다는 의미는 아닙니다.
Cell line은 실제 tumor tissue의 heterogeneity를 완전히 반영하지 못할 수 있습니다.
정상 tissue에도 같은 surface molecule이 존재할 수 있습니다.
환자마다 target expression level이 다를 수도 있습니다.
따라서 Cell-SELEX 결과는 이후 tissue와 clinical sample에서 specificity를 별도로 검증해야 합니다.
Aptamer로 Circulating Tumor Cell을 잡을 수 있을까?
Tumor-associated surface molecule을 인식하는 aptamer를 magnetic bead나 microfluidic surface에 고정할 수 있습니다.
혈액을 통과시키면 해당 surface marker를 가진 cell을 capture하는 전략을 연구할 수 있습니다.
이러한 방식은 circulating tumor cell(CTC) enrichment에 활용될 가능성이 있습니다.
하지만 CTC는 heterogeneous하며 epithelial-to-mesenchymal transition 등으로 surface marker expression이 달라질 수 있습니다.
따라서 하나의 aptamer만으로 모든 CTC를 포획할 수 있다고 가정해서는 안 됩니다.
Aptamer로 Extracellular Vesicle도 잡을 수 있다
EV surface protein을 인식하는 aptamer를 이용해 특정 EV population을 capture할 수도 있습니다.
Magnetic bead나 sensor surface에 aptamer를 고정합니다.
Target surface marker를 가진 EV가 결합하면 이를 분리하거나 직접 검출할 수 있습니다.
이후 EV 내부 miRNA를 분석할 수도 있습니다.
따라서
Aptamer → EV Surface Recognition
EV Isolation → 특정 Particle Enrichment
RNA Analysis → 내부 Cargo 측정
으로 이어질 수 있습니다.
Small Molecule 검출에서 Aptamer가 중요한 이유
Small molecule은 크기가 작아 두 antibody가 동시에 결합하는 sandwich immunoassay를 설계하기 어려운 경우가 있습니다.
Aptamer는 하나의 molecular recognition element로 small molecule과 결합하면서 conformation이 변하도록 설계할 수 있습니다.
따라서 target binding을 직접 structure-switching signal로 변환할 수 있습니다.
이 특성 때문에 metabolite와 drug molecule 등의 biosensor에서도 aptamer가 연구됩니다.
Aptamer의 가장 큰 장점은 무엇일까?
Aptamer의 특징은 recognition molecule 자체가 nucleic acid라는 점입니다.
따라서 sequence synthesis가 가능합니다.
Chemical modification을 정해진 위치에 도입하기 쉽습니다.
Fluorophore, quencher, thiol, biotin 등을 특정 위치에 붙일 수 있습니다.
DNA amplification circuit과 sequence level에서 직접 연결할 수도 있습니다.
또한 thermal denaturation 후 조건에 따라 다시 folding할 수 있는 aptamer도 있습니다.
이러한 특성은 biosensor engineering에 유용합니다.
그렇다면 항체를 Aptamer로 모두 바꿀 수 있을까?
그렇게 일반화할 수는 없습니다.
Antibody는 수십 년 동안 diagnostic assay에서 발전해 왔고 매우 높은 affinity와 specificity를 가진 reagent가 많습니다.
반면 aptamer는 일부 target에서 selection이 어렵거나 실제 biological matrix에서 affinity가 감소할 수 있습니다.
Nuclease degradation도 문제가 될 수 있습니다.
Target의 구조와 chemical property에 따라 좋은 aptamer를 얻기 어려울 수도 있습니다.
따라서 aptamer는 antibody를 무조건 대체하는 기술이라기보다 다른 특성을 가진 molecular recognition platform으로 보는 것이 적절합니다.
실제 혈액에서는 왜 성능이 달라질까?
SELEX buffer는 비교적 단순한 chemical environment일 수 있습니다.
하지만 plasma에는 매우 많은 protein과 ion, lipid가 존재합니다.
이들이 aptamer와 비특이적으로 상호작용할 수 있습니다.
Nuclease가 aptamer를 분해할 수도 있습니다.
Target protein 자체가 다른 protein과 complex를 형성하면서 aptamer binding site가 가려질 수도 있습니다.
따라서 buffer에서 측정한 Kd만으로 실제 plasma sensor 성능을 예측하기는 어렵습니다.
Aptamer의 기본 검출 구조
Structure-switching fluorescence aptamer를 예로 들면 다음과 같이 정리할 수 있습니다.
Target이 없는 경우
Folded Aptamer
→ Fluorophore와 Quencher 근접
→ Low Fluorescence
Target이 존재하는 경우
Target Binding
→ Aptamer Conformational Change
→ Fluorophore-Quencher Separation
→ High Fluorescence
하지만 모든 aptamer가 target binding으로 큰 구조 변화를 만드는 것은 아닙니다.
좋은 binding aptamer가 반드시 좋은 structure-switching sensor라는 의미도 아닙니다.
Binding Aptamer를 Sensor로 바꾸는 별도의 설계가 필요하다
SELEX에서 얻은 aptamer는 target에 잘 결합하는 sequence입니다.
하지만 signal을 생성하려면 target binding을 measurable output으로 변환해야 합니다.
Aptamer가 결합해도 구조가 거의 변하지 않는다면 단순한 fluorophore-quencher sensor로 만들기 어려울 수 있습니다.
이 경우 complementary strand displacement,
Split aptamer,
Nanoparticle assembly,
Electrochemical interface,
DNA circuit
등을 추가할 수 있습니다.
따라서 aptamer discovery와 aptasensor engineering은 서로 다른 단계입니다.
Split Aptamer는 무엇일까?
하나의 aptamer를 두 fragment로 나누고 target이 존재할 때 두 fragment가 함께 assembly되도록 설계하는 방식이 있습니다.
Target이 molecular bridge 역할을 하면서 functional aptamer complex를 안정화할 수 있습니다.
이 assembly를 fluorescence나 DNA reaction과 연결할 수 있습니다.
Split aptamer는 background를 줄이거나 target-dependent proximity를 만드는 데 활용할 수 있지만 aptamer를 나누면서 affinity가 감소할 수도 있습니다.
따라서 split position을 신중하게 선택해야 합니다.
Aptamer Sensor에서 Single-Nucleotide Specificity라는 표현은 적절할까?
Target이 DNA나 RNA라면 complementary probe의 mismatch discrimination을 논할 수 있습니다.
하지만 protein이나 small molecule을 인식하는 aptamer에서 ‘single-nucleotide specificity’라는 표현은 다른 의미가 됩니다.
Aptamer 자신의 nucleotide 하나가 바뀌면 folding과 affinity가 크게 변할 수 있지만 이것은 target DNA의 SNV를 구별한다는 의미가 아닙니다.
Aptamer sensor의 specificity는 어떤 molecular target을 선택적으로 결합하는가로 평가하는 것이 기본입니다.
Aptamer와 CRISPR를 연결할 수 있을까?
CRISPR-Cas system은 기본적으로 nucleic acid recognition에 강점이 있습니다.
Protein이나 small molecule은 Cas12나 Cas13이 직접 인식하는 일반적인 target이 아닙니다.
하지만 aptamer가 target에 결합하면서 DNA trigger를 방출하도록 설계하면 상황이 달라집니다.
방출된 DNA를 amplification하거나 Cas12 activator로 연결할 수 있습니다.
즉,
Non-Nucleic-Acid Target
→ Aptamer Recognition
→ DNA Trigger Release
→ CRISPR Activation
→ Collateral Reporter Cleavage
로 protein 또는 small molecule information을 CRISPR-readable nucleic acid signal로 변환할 수 있습니다.
Aptamer와 PLA·PEA의 차이
| 구분 | Aptamer Sensor | PLA | PEA |
|---|---|---|---|
| 주요 인식체 | DNA·RNA Aptamer | Antibody-DNA Probe | Antibody-DNA Probe |
| 표적 | Protein·Small molecule 등 | 주로 Protein | 주로 Protein |
| 핵심 변환 | Binding·구조 변화 | Proximity-dependent ligation | Proximity-dependent extension |
| PCR 연결 | 설계에 따라 가능 | 가능 | 가능 |
| Recognition molecule 자체 | Nucleic acid | Protein + DNA | Protein + DNA |
| Multiplexing | Sequence 설계 가능 | DNA barcode 가능 | DNA barcode 가능 |
Aptamer의 독특한 점은 target을 인식하는 molecule 자체가 nucleic acid라는 것입니다.
SELEX 결과를 평가할 때 확인할 내용
좋은 aptamer라고 판단하려면 sequence가 enrichment됐다는 사실만 확인해서는 부족합니다.
Target affinity를 측정해야 합니다.
유사한 non-target에 대한 cross-reactivity를 확인해야 합니다.
실제 sample condition에서 binding이 유지되는지도 확인해야 합니다.
Nuclease stability가 필요한 application이라면 degradation도 평가해야 합니다.
Sensor로 사용할 경우 target binding이 실제 signal change로 연결되는지도 검증해야 합니다.
즉, Selection Success와 Diagnostic Performance는 같은 개념이 아닙니다.
임상 분자진단으로 발전하려면
Aptamer 기반 assay가 실제 임상검사로 발전하려면 여러 단계의 검증이 필요합니다.
Aptamer synthesis batch가 달라져도 folding과 binding이 재현되어야 합니다.
Patient sample matrix에서도 specificity가 유지되어야 합니다.
Target concentration에 따른 quantitative response를 검증해야 합니다.
유사 protein과 metabolite의 interference를 확인해야 합니다.
Disease와 benign condition을 포함한 임상 cohort에서 diagnostic performance를 평가해야 합니다.
따라서 매우 낮은 LOD를 보고한 aptasensor 연구가 곧바로 임상검사를 의미하는 것은 아닙니다.
Aptamer가 분자진단에서 갖는 의미
Aptamer의 가장 흥미로운 점은 DNA와 RNA가 단순한 genetic information carrier를 넘어 molecular recognition material이 될 수 있다는 사실입니다.
Sequence를 바꾸면 folding structure가 달라집니다.
Structure가 달라지면 target interaction도 달라집니다.
SELEX는 이 거대한 sequence space에서 원하는 binding property를 가진 molecule을 선택합니다.
그리고 선택된 aptamer를 fluorescence, electrochemistry, nanoparticle, SERS, CHA, HCR 또는 CRISPR와 연결하면 target binding을 다양한 diagnostic signal로 변환할 수 있습니다.
즉, aptamer는 분자 인식과 nucleic acid engineering 사이의 경계를 연결하는 programmable recognition element라고 볼 수 있습니다.
마치며
Aptamer는 특정 target과 선택적으로 결합하도록 선별된 DNA 또는 RNA molecule입니다.
대표적인 discovery 과정인 SELEX는
Random Nucleic Acid Library
→ Target Binding
→ Bound·Unbound Partition
→ Target-Bound Sequence Recovery
→ Amplification
→ Repeated Selection
→ Enriched Sequence Identification
으로 정리할 수 있습니다.
선별된 aptamer는 target과 결합하는 것만으로 진단 센서가 완성되는 것은 아닙니다.
Target recognition을
Conformational Change
Fluorescence
Electrochemical Signal
Nanoparticle Assembly
DNA Trigger Release
Nucleic Acid Amplification
같은 measurable output으로 변환하는 추가적인 molecular engineering이 필요합니다.
Aptamer 기술의 핵심은 항체를 단순히 DNA로 대체하는 데 있지 않습니다. DNA·RNA sequence가 만들어내는 3차원 구조 자체를 molecular recognition element로 사용하고, 그 recognition event를 다시 nucleic acid circuit과 직접 연결할 수 있다는 점이 분자진단에서의 가장 독특한 특징입니다.
※ 본 글은 aptamer, SELEX와 aptamer 기반 바이오센서의 원리를 설명하기 위한 교육 목적의 콘텐츠입니다. 특정 연구에서 보고된 결합 친화도나 검출한계를 특정 질환에 대해 검증된 임상 진단 성능으로 해석해서는 안 됩니다.


댓글 0
첫 댓글을 남겨보세요.